De evolutietheorie ontkracht
Genesis is waar
De kans dat de fossiele geslachten Ardipithecus en Australopithecus onze ‘voorouders’ zouden zijn, is vrijwel nihil
Enkele weken geleden werd onze aandacht getrokken door het boekje “In het spoor van de mens – Een evolutionaire zoektocht naar de eerste mensen”. Het boekje betreft zoals de titel al aangeeft een publicatie aangaande de zogenaamde evolutionaire ‘geschiedenis’ van de mens, dat reeds in het najaar van 2023 bij Academia Press werd gepubliceerd. Het is duidelijk dat het boekje niet meteen een internationale bestseller is geworden, maar het blijft altijd spannend wanneer er in Vlaanderen iets verschijnt om de wat in het slop geraakte Evolutietheorie weer eens onder de aandacht van de goegemeente te brengen. Dit keer voelde evolutiebioloog Dominique Adriaens van de vakgroep Biologie van de Universiteit Gent zich geroepen om Vlaanderen en misschien ook Nederland aangaande het thema nog eens bij te spijkeren. Zoals de ondertitel van het boekje aangeeft, betreft de publicatie “een evolutionaire zoektocht naar onze voorouders”. Dit betekent dat van de lezer verwacht wordt dat hij of zij als een “evolutionaire detective” – zoals Adriaens het noemt – meteen zijn Darwinistische vergrootglas moet bovenhalen om de “zoektocht naar onze voorouders” aan te vatten. Het spijtige is dat die onderneming – in tegenstelling tot serieus detectivewerk – niet zomaar het resultaat is van onbevooroordeeld, neutraal wetenschappelijk onderzoek.
Wanneer men begint te lezen, valt het al meteen op dat Adriaens bijvoorbeeld heel erg vaag blijft over wat ‘een mens’ nu precies is. Adriaens probeert de mens hoofdzakelijk op het ‘materiële, lichamelijke niveau’ te definiëren. Het ‘materiële lichamelijke niveau’ – ook wel het ‘fysieke niveau’ genoemd – is natuurlijk het meest tastbare en zichtbare aspect van de mens. Het omvat het fysieke lichaam, inclusief alle organen, botten, spieren, cellen en zenuwstelsel. In een meer ‘holistische visie’ wordt de mens echter gezien als een complex samenhangend geheel. Het fysieke lichaam fungeert hierbij als de drager van de andere niveaus (mentaal, emotioneel, energetisch en spiritueel). Toch trekt Adriaens de mens naar beneden naar het pure ‘materiële, lichamelijke niveau’. Het kan dan ook niet anders dan dat volgens Adriaens de zogenaamde ‘eerste mens’ of ‘mensachtige’ die zich “afsplitste van de chimpansee” geen ‘mens’, maar eerder een ‘aap’ of op zijn best een ‘mensaap’ moet zijn geweest.
Adriaens beweert dus dat ‘mensen’ “biologisch gezien mensapen” zijn. Je kan je natuurlijk de vraag stellen over de waarde van een dergelijke uitspraak omdat mensen – objectief gezien – géén ‘apen’ zijn! Een reeks unieke fysieke en gedragsmatige kenmerken onderscheidt de mens fundamenteel van de andere zoogdieren. Vijf voor de mens kenmerkende groepen van eigenschappen, gedragingen en vaardigheden spelen een sleutelrol: (1) de cognitieve schaal, de informatiecapaciteit, de neurologische structuur en de dichtheid van de hersencellen, (2) het vermogen tot abstract en symbolisch gedrag en taal, (3) de fijne motoriek (precisiegreep), (4) het vervaardigen van complexe werktuigen, en later (5) het domesticeren van vuur, planten en dieren. Al deze eigenschappen, gedragingen en vaardigheden waren vanaf het begin – ten minste in potentie – onderdeel van het menselijke wezen. De populistische term ‘mensaap’ is suggestief, maar blijft ‘hangen’ omdat het de biologische en conceptuele grenzen tussen mens en aap lijkt op te heffen. Merkwaardig is de taalkundige paradox die de aap in het dagdagelijkse taalgebruik eerder als de tegenpool van de mens afschildert, maar zo heeft de wetenschappelijke avant-garde het niet begrepen. Probleem blijft echter, dat zelfs de meest fanatieke Darwinisten de mens niet tot dé ‘apen’ kunnen rekenen. Met de term ‘mensaap’ heeft men de geesten echter kunnen ‘masseren’ en is men er uiteindelijk wél in geslaagd om apen én mensen taxonomisch in de superfamilie van de Hominoidea onder te brengen. Taxonomie betreft echter enkel de methodiek van het classificeren van (levende) wezens in hiërarchische groepen zonder dat er per se sprake is van evolutionaire afstamming.
Dergelijke biologische classificaties zijn intellectuele constructies die door de mens zélf zijn bedacht. Concepten, theorieën, modellen of ideeën worden door het menselijke denken gevormd om de werkelijkheid te begrijpen, te ordenen of te verklaren. Het gaat hierbij niet om tastbare, fysieke objecten, maar om mentale bouwwerken die gebaseerd zijn op logica, abstractie, interpretatie en ideologie. Intellectuele constructies helpen ons om grip te krijgen op complexe systemen. Ze vertalen de chaotische of complexe werkelijkheid naar overzichtelijke concepten. Ze bestaan omdat mensen er betekenis aan geven en wetenschappers er – door middel van definities – afspraken over maken. Hoewel intellectuele constructies noodzakelijk zijn om de wereld te begrijpen, schuilt er ook een risico in: reïficatie (of verdinglijking). Dit gebeurt wanneer mensen of wetenschappers gaan geloven of doen alsof die intellectuele constructies de volledige en absolute werkelijkheid vertegenwoordigen, in plaats van slechts een hulpmiddel of model om die werkelijkheid te beschrijven. Laat het duidelijk zijn: mensen zijn mensen en chimpansees, gorilla’s en orang-oetans zijn gewone apen. Er is niets ‘menselijks’ aan een aap.
Tot de Hominoidea behoren tegenwoordig gibbons, orang-oetans, gorilla’s, chimpansees en ménsen. Het blijft echter een raadsel waarom de Hominoidea en dus ook de mens ‘staartloze apen’ zouden zijn omdat apen sowieso nooit een staart hebben. De Cercopithecidae zijn in feite de familie van de ‘staartapen’ (= monkeys). Als je dan toch de mensen – omwille van ideologische redenen – tot de apen zou willen rekenen, dan zou je beter spreken van ‘staartloze staartapen’, want een ‘staartloze aap’ is een tautologie. Hetzelfde geldt voor de familie Hominidae (= de grote ‘apen’) die een biologische familie van primaten zijn met grotere lichamen en relatief grotere hersenen waartoe mensen, chimpansees, bonobo’s, gorilla’s en orang-oetans zouden behoren. Het is echter niet omdat de Hominidae – op de mens na – facultatief bipedaal zijn – hetgeen betekent dat ze tijdelijk op twee poten kunnen staan en lopen, maar zich normaal gesproken op vier poten (quadrupedaal) voortbewegen – dat ze plots ‘mensachtig’ zouden zijn. Beren bijvoorbeeld zijn immers ook facultatief bipedaal, maar niemand zal hen tot de ‘mensachtigen’ rekenen. Welke zin heeft het dan om mensen en apen in één groep samen te gooien?
Tot ongeveer 1960 verdeelden taxonomen de superfamilie Hominoidea doorgaans in twee families. De wetenschappelijke gemeenschap beschouwde mensen als de ‘buitengroep’ (= outgroup) binnen deze superfamilie. Dit wil zeggen dat mensen als vrij ver verwijderd van de ‘apen’ werden beschouwd. Mensen werden binnen de superfamilie Hominoidea ingedeeld in de familie Hominidae en aangeduid als ‘hominiden’. Alle overige hominoïden (gibbons, orang-oetans, gorilla’s en chimpansees) werden beschouwd als ‘apen’ en ondergebracht in de familie Pongidae. In de jaren ’60 en ’70 van de vorige eeuw werd er binnen de wetenschappelijke wereld veel druk uitgeoefend om de verschillen tussen mens en aap te minimaliseren. In een poging om toch de status van de mens als de ‘buitengroep’ te behouden, werd in de jaren ’70 van de vorige eeuw de onderfamilie Homininae onderverdeeld in twee tribussen: (1) Gorillini, die de geslachten Pan en Gorilla omvatten; en (2) Hominini, dat het geslacht Homo (de mens) omvat. Mensen werden voortaan aangeduid als ‘homininen’ – oftewel behorend tot de tribus Hominini. Hiermee verving de term ‘hominine’ het eerdere gebruik van ‘hominide’, een term waarvan inmiddels de betekenis was veranderd door wijzigingen in de classificatie binnen de familie Hominidae. Vervolgens zouden DNA-vergelijkingen in het begin van de jaren ’90 van de vorige eeuw het bewijs hebben geleverd, dat de gorilla – en niet de mens – de ‘buitengroep’ zou zijn in de onderfamilie Homininae. Zo werd plots de chimpansee samen met de mens in de tribus Hominini ondergebracht. Tegenwoordig wordt dus – uiteindelijk omwille van puur ideologische redenen – de mens samen met de chimpansee ondergebracht in de tribus Hominini, waardoor de mens niet langer erkend wordt als zijnde de ‘buitengroep’, maar slechts gezien wordt als een tak die stevig bevestigd is aan de stamboom van de groep die vóór 1960 als de ‘apengroep’ werd beschouwd.
Mission accomplished? Ondanks de promotie van allerlei ideologisch geïnspireerde taxonomieën blijft het fundamentele ‘probleem’ dat mensen nu eenmaal géén apen zijn. Het is zonder meer duidelijk dat vanuit evolutionair standpunt mensen niet kunnen afstammen van de moderne apen die we vandaag kennen. De Darwinisten claimen echter dat er ergens – zo’n 6 tot 8 miljoen jaar geleden – een gemeenschappelijke voorouder van mensen en moderne apen moet geweest zijn. Want hoewel we niet afstammen van de levende apensoorten, zouden we – volgens de wetenschappelijke avant-garde – biologisch gezien wél tot de grote apen behoren. Dat de laatste gemeenschappelijke voorouder zelf ook een primaat was, kunnen we als argument nog accepteren, maar deze laatste gemeenschappelijke voorouder kan nooit een ‘aap’ geweest zijn. Toch beweert de wetenschappelijke avant-garde – en dus ook Dominique Adriaens – dat qua bouw en leefwijze deze laatste gemeenschappelijke voorouder méér op een hedendaagse chimpansee dan op een mens leek. Hoe zou dit mogelijk kunnen zijn? Zijn chimpansees dan 8 miljoen jaar lang niet geëvolueerd? Echter, het identificeren van de vroegste, fossiele ‘voorouder’ van de mens houdt noodzakelijkerwijs in, dat deze op de één of andere manier onderscheiden moet kunnen worden van de fossiele ‘voorouder’ van de chimpansee. Is het niet eerder zo dat er 8 miljoen jaar geleden ook al een aap leefde die op een chimpansee leek en dat die aap bijgevolg de voorouder van de chimpansee is en niet de voorouder van de mens?
In het evolutionaire denken zijn echter zowel de mens als de chimpansee veronderstelde chronosoorten. Een chronosoort of een chronospecies is een soort die voortkomt uit een sequentieel ontwikkelingspatroon met continue en uniforme veranderingen vanuit een uitgestorven voorouderlijke vorm op een evolutionaire schaal (= anagenese). De reeks veranderingen leidt volgens de Evolutietheorie uiteindelijk tot een populatie die fysiek, morfologisch en/of genetisch verschilt van de oorspronkelijke voorouders. Gedurende de hele verandering is er op elk moment slechts één soort in de afstammingslijn, in tegenstelling tot die gevallen waarin zogenaamde ‘divergente evolutie’ soorten met een gemeenschappelijke voorouder voortbrengt. Indien er sprake is van een gemeenschappelijke voorouder van mens en chimpansee dan is er dus ook nog eens sprake van divergente evolutie waarbij de verschillen in een taxonomische groep tot soortvorming zou leiden. Cladogenese is het hypothetische evolutionaire proces waarbij een voorouderlijke soort zich opsplitst in twee of meer nieuwe, afzonderlijke soorten. Een kritische analyse van het concept cladogenese (= vertakkende evolutie) vereist natuurlijk dat we ook eens verder kijken dan de handboekdefinitie. Hoewel cladogenese de fundamentele motor achter de biologische diversiteit op aarde zou moeten zijn, kent het concept heel wat theoretische en praktische problemen, met name binnen de paleontologie, taxonomie en microbiologie. Cladogenese is in theorie een onmisbaar model om de zogenaamde evolutionaire ‘boom van het leven’ te visualiseren en te analyseren, maar het blijft slechts een conceptueel model dat niet empirisch onderbouwd is.
We willen er echter op wijzen, dat er ook nog andere processen aan het werk geweest kunnen zijn. Denken we maar aan het concept van de zogenaamde “ringsoorten” (= ring species). Een ‘ringsoort’ is een biologische soort die bestaat uit meerdere variëteiten die geografisch een ring of cirkel rondom een obstakel vormen, waarbij ten minste twee variëteiten zich onderling niet meer kunnen voortplanten. De ‘ring’ ontstaat wanneer een geografisch uitbreidende soort op een onbewoonbare regio stuit waarbinnen zij niet kan overleven (bijvoorbeeld een woestijn, een gebergte of een zee/meer). Vervolgens verspreidt de soort zich hoefijzervormig langs de randen van deze regio, totdat de twee “uiteinden” elkaar weer aan de overkant ontmoeten, waarbij de variëteiten zich intussen zodanig hebben ontwikkeld dat onderlinge voortplanting onmogelijk is geworden. Ringsoorten zijn als zodanig dus géén bewijs voor ‘evolutie’ aangezien het verschillende variëteiten van éénzelfde soort betreft die zich aanpassen aan hun specifieke omgeving en daardoor niet genetisch veranderen ten opzichte van elkaar, maar gebruik maken van de in potentie aanwezige attributen (= de verborgen, overerfbare genetische variatie) binnen diezelfde soort. Een voorbeeld van een ringsoort is het Larus-meeuwen-complex. De zilvermeeuw (Larus argentatus) en de kleine mantelmeeuw (Larus fuscus) lijken in Noord-Europa op afzonderlijke soorten die niet met elkaar kruisen. Dit proces gaat dus eerder gepaard met een verlies aan fertiliteit. Echter, via een keten van tussenvormen die elkaar opvolgen via Noord-Amerika en Siberië, kan elke naburige populatie wel met de volgende kruisen, waardoor er een ononderbroken ring rond de pool ontstaat en waarbij alle populaties in feite tot diezelfde soort behoren. Met andere woorden, hoewel het erop lijkt dat we met twee soorten te maken hebben Larus argentatus en Larus fuscus blijken zij tot één soort te behoren. Dit is dus géén voorbeeld van cladogenese en hier is dus ook géén sprake van evolutie, maar eerder van pseudo-evolutie. Pseudo-evolutie van het fenotype – vaak aangeduid als fenotypische plasticiteit – verwijst naar een verandering in het uiterlijk van een organisme zonder dat er een verandering optreedt in het DNA van het organisme (= het genotype).
In het overzichtsartikel Lineages, splits and divergence challenge whether the terms anagenesis and cladogenesis are necessary uit 2016 betogen Vaux, Trewick en Morgan-Richards dat het concept ‘soort’ in feite willekeurig is, dat soortvorming (speciatie) vrijwel onmogelijk te bestuderen valt (zeker in het fossielenbestand), en dat de termen anagenese en cladogenese verwarrend, overbodig en wellicht zelfs misleidend zijn. De meest gangbare definitie van cladogenese is het opsplitsen van evolutionaire lijnen, terwijl anagenese staat voor evolutionaire verandering binnen dergelijke opsplitsingen. Cladogenese wordt bovendien vaak synoniem gesteld aan soortvorming. Deze definities zijn misleidend, omdat paleontologisch onderzoek geen directe schatting van genenstromen (= gene flow) mogelijk maakt, omdat fossielen geen bruikbaar, intact DNA bevatten om paringen tussen populaties rechtstreeks te meten. Met andere woorden, fossielen leveren geen hard bewijs voor voortplanting. Bovendien kunnen de termen niet worden gebruikt om soortvorming te beschrijven zonder dat dit willekeurig of relatief wordt. De nadruk op het opsplitsen van lijnen miskent bovendien het belang van divergentie, hybridisatie, uitsterven en de informatieve waarde bij de classificatie van soorten. Nieuwe soorten ontstaan vanuit evolutionair perspectief niet ogenblikkelijk en daarom is het lastig, zo niet onmogelijk, om het exacte tijdstip van hun ontstaan nauwkeurig vast te stellen. Probleem is nu net dat we binnen de Paleoantropologie in feite niet weten welke de directe fossiele ‘voorouders’ van de mens en welke de directe fossiele ‘voorouders’ van de aap zijn. Laat staan dat een laatste gemeenschappelijke ‘voorouder’ van mens én aap geïdentificeerd zou kunnen worden.
Aangezien er weinig tot niets bekend is over de vooroudervormen van chimpansees kunnen we hun veronderstelde morfologische kenmerken hooguit afleiden uit de huidige, bestaande soorten: een ‘top-down’-benadering dus. Maar, dit is vanuit logisch oogpunt echter onjuist omdat chimpansees volgens het Darwinistische model gedurende 6 tot 8 miljoen jaar ook geëvolueerd zouden moeten zijn net zoals de mensen. Intuïtief blijft de ‘top-down’-benadering aantrekkelijk, omdat men nog steeds nogal makkelijk aanneemt, dat de omvang van de menselijke evolutionaire verandering in diezelfde periode aanzienlijk groter moet zijn geweest dan die van de chimpansee. Met andere woorden, in het Darwinistische model zouden de grote apen niet of nauwelijks zijn geëvolueerd, terwijl de mens juist heel erg sterk zou zijn geëvolueerd, net omdat de verschillen tussen de evolutionaire ‘eindresultaten’ – chimpansees en mensen – zo groot zijn. Indien dit zou kloppen, moet er dus sprake zijn geweest van een ‘evolutionair proces met twee snelheden’, omdat de apen schijnbaar niet of nauwelijks zijn geëvolueerd (stasis) en mensen ogenschijnlijk net heel erg snel zouden zijn geëvolueerd. Vanuit het Darwinisme is er echter geen enkele verklaring voor het ‘feit’ waarom apen dan niet of nauwelijks geëvolueerd zouden zijn. Dat vermeende ‘evolutionair proces met twee snelheden’ kan echter alleen maar ‘waargenomen’ worden door de chimpansee als referentiepunt te nemen en te veronderstellen, dat soorten veranderlijk zijn en dat de chimpansee en de mens ergens een gemeenschappelijke voorouder zouden hebben gehad!
Hoe vaak hebben we niet gehoord dat de genomen van de mensen en de chimpansee zo op mekaar lijken dat ze op DNA-niveau slechts “1 procent van mekaar verschillen”? Dit argument wordt nog steeds aangehaald om aan te tonen dat de mens en de chimpansee een gemeenschappelijke voorouder moet hebben gehad. Echter, nieuw onderzoek dat werd gepubliceerd door Yoo e.a. 2025 (Complete sequencing of ape genomes in Nature, deel 641, pagina’s: 401-418) werpt een ander licht op de zaak. De nieuwe bevindingen van Yoo e.a. 2025 laten zien, dat menselijk DNA veel sterker verschilt van dat van chimpansees dan voorheen werd aangenomen. Minstens 12,5% en mogelijk zelfs 13,3% van de genomen van chimpansees en mensen bestaat uit een ‘gap-divergentie’ (= gap difference) tussen beide genomen. De gap-divergentie is de fractie of het percentage van het DNA dat niet één-op-één uitgelijnd (aligned) kan worden wanneer men de genomen van twee verschillende individuen of soorten met elkaar vergelijkt. Dit betekent dat er in het ene genoom een ‘gat’ zit ten opzichte van het andere – vaak op plekken waar de verschillen zo groot zijn dat de sequenties niet eens met elkaar kunnen worden vergeleken. Daarnaast zijn er aanzienlijke delen van beide genomen die wél met elkaar kunnen worden vergeleken, maar die “korte nucleotidevariaties” vertonen; in deze gebieden bedraagt het verschil ongeveer 1,5%. Als we dit percentage optellen bij het verschil door de ‘gaten’, komen we uit op een totaalverschil van 14% tot 14,9 % tussen het menselijk genoom en dat van de chimpansee. Dit betekent dat het werkelijke verschil tussen het menselijk DNA en dat van de chimpansee 14 keer zo groot is als het vaak aangehaalde cijfer van 1%. De autosomale gap-divergentie ten opzichte van de mens was trouwens nog hoger bij de gorilla (17,9% – 27,3%)!
Dat de tegenwoordige wetenschappelijke avant-garde eigenlijk niet erg origineel is in haar denken, toont het werk van de Italiaanse vrijdenker en filosoof Giulio Cesare (Lucilio) Vanini aan. In zijn werk De Admirandis Naturae Reginae Deaeque Mortalium Arcanis dat in 1616 werd gepubliceerd, stelde Vanini al een primitieve vorm van biologische evolutie voor. Hij voerde destijds ook al aan dat de mensen van ‘de apen’ zouden afstammen, waarbij ook hij al hun fysiologische en anatomische overeenkomsten opmerkte. John Ray, één van de grondleggers van de taxonomie, introduceerde in 1693 een groep genaamd Anthropomorpha (een naam die Linnaeus later zou overnemen), maar daartoe rekende hij de mens dan weer niet. Ook in andere vroege taxonomische systemen – waaronder dat van Edward Tyson – bleef de mens eveneens buiten beschouwing, ondanks het feit dat Tyson de anatomische en puur morfologische overeenkomsten tussen mensen en ‘staartloze apen’ had gedocumenteerd. Zijn werk Orang-Outang, sive Homo Sylvestris (1699) bevat weliswaar een uitvoerig verslag van deze gelijkenissen, maar hij deed dat om de stelling te onderbouwen dat inter hominem et non-hominem tertium non datur, dus dat er “géén tussenvorm” of “géén derde optie” is tussen de mens en de niet-mens!
De Westerse traditie was weliswaar gebaseerd op het idee van een onveranderlijke wereld, maar de onveranderlijkheid van de soorten maakte niet per se deel uit van dat wereldbeeld. Dit concept werd pas in de achttiende eeuw – ongeveer een eeuw vóór Darwin – algemeen aanvaard. Carl Linnaeus staat algemeen bekend om zijn ondubbelzinnige uitspraken over de onveranderlijkheid van de soorten. Minder bekend is dat Linnaeus één van de vernieuwers van het Fixisme was. Vóór Linnaeus en zijn botanische tijdgenoten waren opvattingen over transmutatie (het veranderen van de ene soort in de andere) en spontane generatie uiterst wijdverspreid. Tegenwoordig wordt er meewarig gedaan over de ‘Fixiteit van de Soorten’ – ook wel de onveranderlijkheid van de soorten genoemd. Kleine verschillen binnen een soort (zoals een andere haarkleur of grootte) waren wel zichtbaar, maar die schommelingen konden volgens het Fixisme nooit leiden tot het ontstaan van een héél nieuwe soort. Ondanks de post-moderne negatieve houding ten overstaan van het Fixisme stelt het biologische soortbegrip aan de andere kant dat een soort een groep van natuurlijke populaties is die zich (potentieel) in de natuur kan voortplanten en dus vruchtbare nakomelingen kan produceren, maar die ook reproductief geïsoleerd is van andere soorten. Een soort is dus biologisch altijd van een andere soort geïsoleerd omdat de leden van verschillende soorten zich onder natuurlijke omstandigheden niet onderling kunnen voortplanten en dus geen levensvatbare, vruchtbare nakomelingen kunnen produceren.
De mechanismen van reproductieve isolatie zijn een verzameling gedragingen, fysiologische en genetische processen die de vorming van nieuwe soorten verhinderen. Ze voorkomen dat leden van verschillende soorten nakomelingen produceren of zorgen ervoor dat eventuele nakomelingen steriel zijn. Deze barrières handhaven de integriteit van een soort door de genenstroom tussen verwante soorten te elimineren. Zoöloog Ernst Mayr classificeerde de mechanismen van reproductieve isolatie in twee brede categorieën: (1) de prezygotische barrières (vóór de bevruchting) en (2) de postzygotische barrières (na de bevruchting) zoals (a) hybride-invieabiliteit (embryo sterft af of de nakomeling is te zwak om te overleven) en (b) hybride-steriliteit (nakomeling groeit wel op, maar is onvruchtbaar zoals een muildier uit een paard en een ezel). Daarnaast is gametische isolatie een bijzondere vorm van prezygotische reproductieve isolatie. Het betekent dat de geslachtscellen (gameten) van twee verschillende soorten niet met elkaar kunnen versmelten, zelfs als ze met elkaar in aanraking komen. Deze reproductieve barrières verhinderen natuurlijk dat er nieuwe soorten kunnen ontstaan. Toch beweren de Darwinisten, dat reproductieve isolatie de essentiële motor van soortvorming is. De vraag blijft natuurlijk hoe tussen twee populaties van eenzelfde soort gedragsmatige, fysiologische of genetische barrières kunnen ontstaan die verhinderen dat de twee populaties zich voortplanten en genen uitwisselen. Wordt hier niet het paard achter de wagen gespannen omdat bijvoorbeeld ringsoorten aantonen dat dit niet zo werkt? Maar ook de ‘evolutie’ van de chimpansee – sinds de splitsing tussen chimpansees en mensen zo’n 8 miljoen jaar geleden – wordt gekenmerkt door een opvallende evolutionaire stagnatie (stasis). Terwijl de chimpansees hun structurele en musculaire stabiliteit behielden, onderging de mens volgens de Darwinisten radicale morfologische en neurologische veranderingen, natuurlijk in de veronderstelling dat de voorouder van de mens een archaïsche chimpansee was!
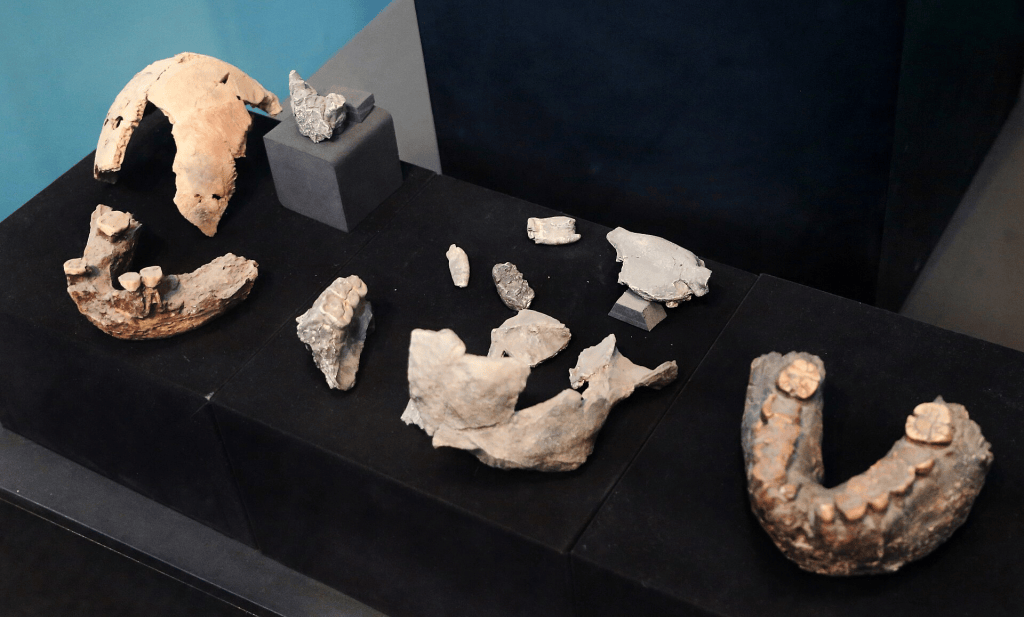
De meeste hedendaagse Paleoantropologen beweren, dat de vermeende fossiele ‘voorouders’ van de mens – Ardipithecus en Australopithecus – ondanks alles méér leken op een chimpansee dan op een mens. Dit vermeende ‘feit’ hoeft natuurlijk niet evolutionair verklaard te worden, maar kan simpelweg uitgelegd worden door erop te wijzen dat Ardipithecus en Australopithecus natuurlijk ook apen zijn die hoogstwaarschijnlijk niets met de mens te maken hebben. De chimpansee kan dus zelfs hypothetisch geen blauwdruk zijn voor de veronderstelde, evolutionaire ‘voorouder’ van de mens. Het gebruik van chimpansees als voorouderlijk model voor de mens is in feite misleidend en wetenschappelijk niet correct, omdat de vermeende ‘voorouders’ van de mens – Ardipithecus en Australopithecus – in werkelijkheid wel eens de daadwerkelijke ‘voorouders’ van de chimpansee of van andere nu uitgestorven apensoorten zouden kunnen zijn. Toch blijft ook Adriaens in zijn boekje Australopithecus afarensis – waarvan het iconische fossiel ‘Lucy’ het bekendste is – als een belangrijke ‘voorouder’ van de latere ‘mens’ afschilderen. Deze soort vormt volgens hem de “perfecte brug” tussen aap en mens. De schedel en het gezicht waren weliswaar nog erg ‘aapachtig’, maar het bekken en de voetbeenderen (zoals ook te zien zou zijn in de beroemde voetafdrukken van Laetoli) tonen volgens hem aan, dat Australopithecus afarensis rechtop kon lopen. De Laetoli-voetsporen die in 1978 in Tanzania door het team van Mary Leakey werden ontdekt, zijn de beroemde voetafdrukken die aan Australopithecus afarensis worden toegeschreven. Ze zouden bewijzen dat de Australopitheek al op twee benen gelopen zou hebben. De enige reden waarom deze sporen aan Australopithecus afarensis worden toegeschreven is hun vermeende hoge ouderdom van ongeveer 3,6 miljoen jaar.
Een eerste vraag die we ons bij deze boude beweringen moeten stellen, betreft de betrouwbaarheid van deze datering. Een tweede vraag betreft de kenmerken van de Laetoli-voetsporen. Komen deze voetsporen overeen met een volledig menselijke vorm van tweevoetigheid of betreft het eerder een aapachtige manier van zogenaamde ‘facultatieve tweevoetigheid’? Op die cruciale vraag geven de wetenschappers natuurlijk niet hetzelfde antwoord. Naast de bipedie van de mens en de vermeende bipedie van de Australopitheek bestaan er trouwens ook nog andere dieren zoals bepaalde vogels – bijvoorbeeld de struisvogel en de kip – en bepaalde kangoeroes die bipedaal zijn. Bipedie is dus niet iets wat exclusief ‘menselijk’ zou zijn. Maar, zelfs indien de Australopitheek bipedaal geweest zou zijn, betekent dat nog niet dat er enige evolutionaire verwantschap zou zijn tussen Australopitheken, beren of mensen. Recent uitgevoerde experimenten tonen trouwens aan dat de voetafdrukken van Laetoli opvallend sterk op die van échte mensen lijken. Sommige wetenschappers menen daarom dat er tegelijk met deze apengeslachten (Ardipithecus en Australopithecus) ook nog een andere mysterieuze ‘soort’ was die zich op een volledig menselijke manier voortbewoog. Eén onderzoeker, R. Tuttle (1985: Ape footprints and Laetoli impressions: A response to the SUNY claims. In: Tobias, P. (ed.): Hominid evolution: Past, present, and future. New York: Alan R. Liss, pp 129-133), gaat zelfs zo ver dat hij de voetsporen van Laetoli toeschrijft aan Homo; échte mensen dus.
Indien dit zou kloppen moeten zowel Ardipithecus als Australopithecus als potentiële ‘voorouders’ van de mens verworpen worden! Dit alles hoeft ons niet te verbazen. De eerste resten van de Australopitheek werden in 1935 gevonden door Louis Leakey die een onderste hoektand ontdekte bij de Olduvai Gorge – Specimen M 18773 (later M. 42323) – welke hij toewees aan een ‘baviaan’. Pas in 1977 werd dit fossiel ‘herkend’ als zijnde de tand van een ‘mensachtige’. De vraag werpt zich op waarom het 42 jaar moest duren om een ‘mensachtige’ tand te herkennen en wat de wérkelijke redenen waren om de determinatie ‘baviaan’ zo fundamenteel te herzien? Indien zowel Ardipithecus als Australopithecus als potentiële menselijke ‘voorouder’ afgewezen moet worden, dan blijft de mens natuurlijk verweesd achter, omdat de mens dan daadwerkelijk géén gekende evolutionaire ‘voorouders’ meer zou hebben! Meteen rijst de vraag of de evolutie van de mens wérkelijk zo radicaal was als de Darwinisten beweren? Volgens de Darwinisten is de mens biologisch gezien slechts een “subtiele variatie op de Afrikaanse mensaap”. Maar, het resultaat van die “subtiele variatie” – onze cultuur, taal en technologie – hebben geleid tot een radicale breuk in de geschiedenis van het leven op aarde. Maar, was de mens niet in potentie vanaf het begin voorbestemd om de dierlijke biologie te overstijgen? Was het niet Aristoteles die stelde dat alles in de natuur een telos – een uiteindelijk doel – heeft, evenals een beweging van potentiële naar feitelijke status? Hoewel de mens biologische functies met de dieren deelt, ligt de uiteindelijke verwezenlijking van de mens op intellectueel en moreel vlak, hetgeen ver uitstijgt boven het louter dierlijk overleven.
We kunnen ons niet langer van de indruk ontdoen, dat de klakkeloze ‘acceptatie’ van de Evolutietheorie door de ‘wetenschappelijke’ goegemeente veel te maken heeft met het concept van ‘Suspension of disbelief’ hetgeen vertaald kan worden als ‘het opschorten van ongeloof’. Deze literaire term slaat op de bereidheid van de lezer of toeschouwer om bij een fictief verhaal (= de plot) zijn of haar scepticisme, denkvermogen en feitenkennis (tijdelijk) opzij te zetten. Gebeurtenissen die in werkelijkheid niet mogelijk zijn – zoals bijvoorbeeld de Metamorfosen van Ovidius – worden geaccepteerd als ‘wel mogelijk’ binnen het fictieve universum waarin het verhaal zich afspeelt. De lezer zal er dan niet al te diep over nadenken en zich niet laten afleiden van het verhaal door de gedachte dat wat hij of zij leest nooit echt kan gebeuren of ingaat tegen alle geldende logica. De term ‘Suspension of disbelief’ is in die zin van toepassing op genres als sciencefiction en fantasy, maar kan in feite slaan op elk soort (fictief) verhaal dat er naar streeft om ‘realistisch’ te willen zijn.
In feite waagt Adriaens zich in zijn boekje aan het evolutionaire paradigma, het verhaal of de plot, of het fictieve universum van de Evolutie zélf, iets waar de gemiddelde wetenschapper zich in feite nooit mee bezig houdt. Dit is ook één van de redenen waarom paradigma’s zo hardnekkig kunnen overleven, omdat iedereen ze aanvaardt zonder zich er vragen bij te stellen (= ‘Suspension of disbelief’). In de wetenschap en filosofie verwijst het paradigma naar het overkoepelende, theoretische kader of een breed geaccepteerde verzameling van – in feite subjectieve – opvattingen en aannames die bepalen hoe een specifieke discipline begrepen moet worden. Het paradigma stelt dat de vermeende ‘voorouders’ van de mens – Ardipithecus en Australopithecus – rechtoplopende ‘tweevoeters’ werden na de trek van de tropische bossen (= het huidige leefgebied van Pan en Gorilla) naar de open savannes in Oost-Afrika. Dit vermeende ‘feit’ wordt echter tegengesproken door zowel het fossiele, het paleo-ecologische, als het vergelijkend biologische en fysiologische bewijsmateriaal. Met andere woorden, Ardipithecus en Australopithecus waren géén rechtoplopende ‘tweevoeters’.
Het is duidelijk, dat vanuit de biologie de mens en de nog levende apen als soorten niet aan elkaar gelinkt kunnen worden omdat soorten nu eenmaal afgescheiden, discrete eenheden zijn die reproductief geïsoleerd zijn. Maar, vanuit de Paleoantropologie kunnen fossielen van mensen en apen ook niet aan elkaar gelinkt worden door een gekende, gemeenschappelijke, fossiele ‘voorouder’. De verweesde ‘eerste mens’ heeft nog steeds géén gekende ‘voorouders’ en de wetenschappelijke kans dat de chimpansee-achtige fossielen van Ardipithecus en Australopithecus evolutionair gezien onze directe ‘voorouders’ zouden zijn, is – in tegenstelling tot wat evolutiebioloog Dominique Adriaens van de vakgroep Biologie van de Universiteit Gent beweert – vrijwel nihil. Het is en blijft een feit – en een goed bewaard geheim onder Paleoantropologen – dat de zogenaamde Missing Links tussen aap en mens nog steeds missing zijn.

